
서 론
식물 유래 유산균은 동물 유래 유산균에 비해 상대적으로 영양분이 제한되고 다양한 환경적 스트레스에 노출된 식물 생태계에서 생육하기 때문에 우수한 환경 적응력과 생존력을 갖는 것으로 알려져 있다. 또한 제한된 영양 환경에서 다양한 대사산물을 생성하고 영양원을 효율적으로 이용함으로써 미생물 군집 내에서 경쟁 우위를 확보할 수 있는 특징을 지닌다[1]. 이러한 특성으로 인해 식물성 유산균은 차세대 프로바이오틱 균주로 주목받고 있으며, γ-aminobutyric acid 생성, 면역 조절, 항균 활성, 지질대사 개선, 체지방 감소 및 알레르기 완화 등 다양한 생리활성을 나타내는 것으로 보고되었다[2,3]. 유산균을 이용한 발효식품은 장내 미생물 균형 유지와 면역 기능 증진 등 건강 증진 효과로 인해 지속적으로 관심을 받고 있다. 특히 김치는 우리나라를 대표하는 식물성 발효식품으로, 발효 과정에서 다양한 유산균이 증식하여 독특한 풍미를 형성할 뿐만 아니라 제품의 품질과 기능성에도 중요한 영향을 미친다. 최근에는 김치가 우수한 기능성을 지닌 신규 프로바이오틱 균주를 확보할 수 있는 중요한 자원으로 평가되면서, 김치 유래 유산균의 생리활성과 산업적 활용 가능성에 대한 연구가 활발히 진행되고 있다. 갓김치는 한국의 대표적인 전통 발효식품 중 하나로, 주원료인 갓(Brassica juncea)은 십자화과에 속하는 채소이며 아시아와 유럽 지역에서 널리 재배되고 있다[4]. 일반적으로 갓김치는 갓을 주재료로 하여 무, 파, 고춧가루, 마늘, 생강, 젓갈 및 설탕 등을 첨가하여 제조하며, 발효 과정에서 유산균이 우점하면서 특유의 향미를 형성한다[5]. 또한 갓은 비타민 A와 C, 무기질, 식이섬유 및 다양한 페놀성 화합물을 풍부하게 함유하고 있으며, 이러한 생리활성 성분은 항산화 및 항암 활성과 밀접한 관련이 있는 것으로 보고되었다[6,7]. 특히 전라남도 여수시 돌산도에서 생산되는 돌산갓은 글루코시놀레이트(glucosinolates), 폴리페놀(polyphenols), 플라보노이드(flavonoids) 등의 기능성 성분을 다량 함유하고 있으며[8,9], 대표적인 글루코시놀레이트인 시니그린(sinigrin)과 그 분해산물인 AITC(allyl-isothiocyanate)는 항균 및 항암 활성에 기여하는 주요 물질로 알려져 있다[10,11]. 최근 건강기능식품에 대한 소비자 관심이 증가함에 따라 기능성 유제품 시장 또한 지속적으로 확대되고 있다. 특히 프로바이오틱 발효유는 장 건강 개선, 면역 기능 증진 및 항산화 활성 등 다양한 건강상 이점을 제공하는 대표적인 기능성 유제품으로 인식되고 있다[12,13]. 이에 따라 천연 식물 유래 소재를 활용하여 발효유의 품질과 기능성을 향상시키기 위한 연구가 활발히 수행되고 있으며, 식물 추출물은 항산화 활성을 제공할 뿐 아니라 유산균의 생육을 촉진하는 프리바이오틱 소재로서 발효 특성을 개선할 수 있는 것으로 보고되고 있다[14,15]. 식물 추출물과 유산균의 상호작용에 관한 연구 역시 지속적으로 보고되고 있다. 식물 유래 환경에서 분리된 유산균은 우수한 프로바이오틱 특성과 함께 항산화 활성, 항균 활성 및 콜레스테롤 저하 효과를 나타내는 것으로 알려져 있으며[16,17], 식물 추출물은 유산균의 증식을 촉진하여 발효유제품의 품질 향상에 기여하는 것으로 보고되었다[18,19]. 또한 유산균 발효는 식물 유래 생리활성 물질의 생체이용률을 증가시키는 효과를 나타내며, 겨자 추출물에서는 페놀성 화합물과 3-phenyllactic acid의 이용률이 향상되었고, 현삼 추출물에서는 항염증 활성이 증진된 것으로 보고되었다[20,21]. 그러나 지금까지의 연구는 갓의 기능성 성분이나 식물 유래 유산균의 생리활성에 주로 초점을 맞추고 있으며, 갓김치에서 분리한 유산균의 프로바이오틱 잠재성과 갓 추출물이 유산균의 생육 및 발효유 제조 특성에 미치는 영향을 종합적으로 평가한 연구는 매우 제한적이다. 따라서 본 연구에서는 갓김치로부터 유산균을 분리하여 용혈능을 통해 안전성을 평가하고, 병원성 미생물에 대한 항균 활성을 조사하였다. 또한 갓 추출물이 유산균의 생육 특성과 발효유 발효 특성에 미치는 영향을 분석하여 기능성이 향상된 포스트바이오틱 발효유 개발 가능성을 검토하고자 하였다. 본 연구 결과는 갓김치 유래 유산균의 산업적 활용 가능성을 제시하는 동시에 국내 전통 농산물인 갓의 고부가가치 활용과 기능성 유제품 개발을 위한 기초자료를 제공할 것으로 기대된다.
재료 및 방법
유산균의 분리를 위해 안성시 소재 가정에서 제조한 갓김치를 시료로 사용하였다. 시료는 37℃에서 호기 및 혐기 조건으로 4주간 발효한 후 실험에 이용하였다. 발효된 시료 100 g에 멸균 증류수 900 mL를 첨가하여 균질기(homogenizer)로 충분히 균질화하였다. 균질액 100 μL를 0.01% sodium azide(Sigma-Aldrich, USA)가 첨가된 MRS agar(MB Cell, Korea)에 도말한 후, 37℃에서 호기 및 혐기 조건으로 colony가 형성될 때까지 배양하였다. 배양 후 형태, 크기 및 색상이 서로 다른 colony를 선별하였으며, 그람염색을 실시한 후 현미경(Nikon, Japan)을 이용하여 형태학적 특성을 관찰하였다. 선별된 균주의 당 이용성은 API 50 CHL kit(bioMérieux, Marcy-l'Étoile, France)를 이용하여 분석하였다. 최종적으로 선별된 균주의 분자생물학적 동정은 전문 분석기관(Solgent, Korea)에 의뢰하여 수행하였으며, 동정이 완료된 균주는 후속 실험을 위해 –80℃에서 보관하였다.
본 연구에서는 Streptococcus thermophilus KCCM 40430과 Lactobacillus delbrueckii subsp. bulgaricus KCCM 35463을 한국미생물보존센터(Korean Culture Center of Microorganisms, KCCM)로부터 분양받아 사용하였다. 상업용 starter culture인 YC-380 (Streptococcus thermophilus 및 Lactobacillus delbrueckii subsp. bulgaricus)은 Chr. Hansen(Denmark)에서 구입하였다. 병원성 균주로는 Escherichia coli KCCM 11569, KCCM 11587, KCCM 11596 및 KCCM 11600을 KCCM에서 분양받아 사용하였다. 유산균은 MRS broth(MB Cell, Korea)에서, 병원성 균주는 LB(Luria–Bertani) broth(Difco, USA)에서 각각 37℃에서 24 h 동안 배양한 후 실험에 사용하였다.
갓김치에서 분리한 유산균의 CFS(cell-free supernatant)를 제조하기 위하여 균주를 MRS broth에 1%(v/v) 접종한 후 37℃에서 24 h 동안 배양하였다. 배양액은 원심분리기(Hanil, Korea)를 이용하여 4℃, 1,690 ×g에서 20 min 동안 원심분리하여 균체와 상등액을 분리하였다. 회수한 상등액의 pH를 측정한 후, 0.45 μm와 0.22 μm syringe filter를 순차적으로 통과시켜 잔존 균체를 제거하고 CFS를 제조하였다. 제조된 CFS는 실험에 사용하기 전까지 –20℃에서 보관하였다.
분리·동정된 유산균의 안전성을 평가하기 위하여 용혈 활성을 조사하였다. 균주는 MRS broth에서 예비 배양한 후, 5%(w/v) defibrinated whole sheep blood(Kisan Biotech, Korea)가 첨가된 blood agar base(Kisan Biotech, Korea)에 접종하여 37℃에서 48 h 동안 배양하였다. 배양 후 colony 주변의 용혈 양상을 관찰하여 용혈 활성을 판정하였다. Colony 주변에 투명한 용혈환이 형성된 경우는 β-용혈, 녹색을 띠는 부분 용혈은 α-용혈, 용혈이 관찰되지 않은 경우는 γ-용혈로 구분하였으며, γ-용혈은 비용혈성(non-hemolytic)으로 판정하였다.
갓김치에서 분리·동정한 유산균의 배양 상등액이 병원성 미생물의 생육에 미치는 영향을 paper disc 확산법으로 평가하였다. 시험균주로는 Escherichia coli KCCM 11569, KCCM 11587, KCCM 11596 및 KCCM 11600을 사용하였다. 각 병원성 균주를 1%(v/v)가 되도록 20 mL의 LB agar에 접종하여 배지를 제조하였다. 유산균 배양 상등액은 원액과 함께 멸균 증류수로 각각 50%, 25% 및 12.5% 농도로 희석하였다. 이후 각 시료 40 μL를 멸균 paper disc(Advantec, Japan)에 흡수시켜 병원성 균주가 접종된 LB agar 표면에 올려놓은 후 37℃에서 배양하였다. 배양 후 형성된 생육저해환(clear zone)의 직경을 측정하여 항균 활성을 평가하였다.
갓김치에서 분리·동정한 유산균의 내산성을 평가하였다. 균주는 MRS broth에서 12 h 동안 배양한 후, 1 N HCl을 이용하여 배양액의 pH를 2.0으로 조정하였다. 조정된 배양액을 pH 2.0 조건에서 120 min 동안 반응시킨 후 생균수를 측정하여 산성 환경에서의 생존능을 평가하였다.
실험에 사용한 갓은 안성시 소재 하나로마트에서 구입한 신선한 시료를 사용하였다. 갓은 증류수로 세척한 후 60℃에서 24 h 동안 건조하였으며, 건조된 시료를 분쇄하여 추출에 사용하였다. 추출은 열수 추출과 에탄올 추출의 두 가지 방법으로 수행하였다. 열수 추출물(hot water extract, HWE)은 건조 시료와 증류수를 1:10(w/v)의 비율로 혼합한 후 100℃에서 1 h 동안 추출하였다. 에탄올 추출물(ethanol extract, EE)은 건조 시료와 70% 에탄올을 1:10(w/v)의 비율로 혼합하여 실온에서 48 h 동안 추출하였다. 추출액은 Whatman No. 1 여과지(Cytiva, China)로 여과한 후 감압농축기(rotary evaporator, Eyela, Japan)를 이용하여 농축하였다. 농축된 추출물은 0.45 μm syringe filter(Advantec, Japan)로 여과한 후 4℃에서 보관하며 실험에 사용하였다.
분리·동정된 유산균의 발효 특성을 평가하기 위하여 Streptococcus thermophilus KCCM 40430과 Lactobacillus delbrueckii subsp. bulgaricus KCCM 35463을 비교 균주로 사용하였다. 단일 균주 발효유는 시판 우유 400 mL를 멸균된 삼각플라스크에 분주한 후 각각의 균주를 2%(v/v) 접종하여 37℃에서 24 h 동안 발효하였다. 발효 과정 동안 pH, 적정산도(total titratable acidity, TA) 및 생균수를 일정 시간 간격으로 측정하였다. pH는 pH meter(Mettler-Toledo, USA)를 이용하여 측정하였다. TA는 AOAC(Association of Official Agricultural Chemists) 방법에 따라 측정하였다. 발효유 17.6 mL와 증류수를 1:1(v/v) 비율로 혼합한 후 0.1 N NaOH로 pH 8.3에 도달할 때까지 적정하였으며, 소비된 NaOH의 양을 기준으로 TA를 계산하였다.
생균수는 12 h 간격으로 측정하였다. 발효유를 균일하게 혼합한 후 시료 1 mL를 9 mL의 멸균 0.1%(w/v) peptone water에 넣어 단계 희석하였다. 각 희석액 1 mL를 멸균 petri dish에 분주한 후, 55℃의 water bath에서 보온한 MRS agar를 부어 혼합·응고시켰다. 배지는 37℃에서 colony가 형성될 때까지 배양하였으며, 형성된 colony를 계수하여 시료 1 mL당 colony-forming units(CFU/mL)로 나타내었다. 모든 실험은 3회 반복 수행하였으며 평균값을 사용하였다. 갓 추출물이 발효유의 발효 특성에 미치는 영향을 평가하기 위해 시판 우유 400 mL에 HWE와 EE를 각각 5%(v/v)가 되도록 첨가하였다. 대조구는 추출물을 첨가하지 않은 시료로 설정하였다. 모든 처리구에는 상업용 starter culture인 YC-380을 2%(v/v) 접종한 후 37℃에서 24 h 동안 발효하였다. 발효 과정 중 pH, TA 및 생균수를 동일한 방법으로 측정하였다.
점도는 유산균발효가 완료된 시료를 대상으로 측정하였다. 시료 40 mL를 취하여 NDJ-8S Digital Rotational Viscometer(W&J Instrument, China)의 Spindle No. 4를 사용하여 측정하였다. 측정 전에 시료를 충분히 안정화시킨 후 30 rpm에서 1 min 간격으로 3회 반복 측정하였으며, 평균값을 최종 점도로 사용하였다.
DPPH(2,2-diphenyl-1-picrylhydrazyl) 라디칼 소거능은 발효유와 에탄올을 1:1(v/v) 비율로 혼합한 후 4,000 rpm에서 20 min 동안 원심분리하여 얻은 상등액을 시료로 사용하였다. 시료 상등액과 0.2 mM DPPH ethanol 용액을 1:1(v/v) 비율로 혼합한 후 암실에서 30 min 동안 반응시켰다. 반응이 종료된 후 Epoch Microplate Spectrophotometer(BioTek, USA)를 이용하여 517 nm에서 흡광도를 측정하였다. Blank는 시료 상등액과 methanol을 동일한 비율로 혼합한 용액을 사용하였다. DPPH 라디칼 소거능은 다음 식에 따라 계산하였다.
ABTS(2,2'-azino-bis(3-ethylbenzothiazoline-6-sulfonic acid)) 라디칼 소거능은 Re et al.[22]의 방법을 일부 변형하여 측정하였다. ABTS 라디칼 용액은 7 mM ABTS diammonium salt 용액 5 mL와 140 mM potassium persulfate 용액 88 μL를 혼합한 후 암실에서 실온으로 12–16 h 동안 반응시켜 제조하였다. 제조된 용액은 95% 에탄올로 희석하여 734 nm에서의 흡광도가 0.70 ± 0.02가 되도록 ABTS working solution을 조제하였다. 발효 24 h 후 발효유 시료 1 g에 95% 에탄올 9 mL를 첨가하여 혼합한 후, 4℃에서 4,000 rpm으로 20 min 동안 원심분리하여 상등액을 회수하였다. 96-well plate에 시료 상등액 50 μL와 ABTS working solution 150 μL를 혼합한 후 실온 암실에서 10 min 동안 반응시켰으며, 734 nm에서 흡광도를 측정하였다. 0.2 mM ascorbic acid를 양성대조군으로 사용하였다.
ABTS 라디칼 소거능은 다음 식을 이용하여 계산하였다.
여기서 A0는 시료를 첨가하지 않은 대조군의 흡광도이며, A1은 시료를 첨가한 실험군의 흡광도를 의미한다.
결과 및 고찰
발효된 갓김치로부터 유산균을 분리하기 위하여 시료를 멸균 증류수와 혼합하여 균질화한 후 MRS agar에 도말하여 배양하였다. 배양 후 형태학적으로 서로 다른 colony를 선별하여 그람염색을 실시한 결과, 분리균은 모두 그람 양성의 연쇄상 구균 형태를 나타내었다. 선별된 균주의 당 이용성을 API 50 CHL kit를 이용하여 분석한 결과, Leuconostoc mesenteroides와 99.9%의 상동성을 나타내었다(Table 1). 또한 16S rRNA 염기서열 분석 결과에서도 Leuconostoc mesenteroides ATCC 8293과 99%의 상동성을 보여 최종적으로 본 균주를 Leu. mesenteroides로 동정하였다. 항균 활성 평가를 위한 CFS(cell-free supernatant)는 Leu. mesenteroides를 멸균 MRS broth 10 mL에서 24 h 동안 1차 배양한 후, 이를 50 mL의 멸균 MRS broth에 1%(v/v) 접종하여 37℃에서 24 h 동안 2차 배양하여 제조하였다. 배양액은 원심분리를 통해 균체를 제거한 후, 0.22 μm syringe filter로 여과하여 잔존 균체를 완전히 제거하였다. 제조된 CFS의 최종 pH는 4.159로 측정되었다. 김치는 다양한 유산균이 공존하는 대표적인 식물성 발효식품으로, 발효가 진행됨에 따라 Leuconostoc, Lactiplantibacillus, Levilactobacillus 등의 유산균이 우점균으로 출현하는 것으로 알려져 있다. 특히 Leu. mesenteroides는 김치 발효 초기 우점균으로서 유산, 초산 및 다양한 항균성 대사산물을 생성하여 발효 품질과 저장성을 향상시키는 중요한 균주로 보고되고 있다[23,24]. 본 연구에서도 갓김치로부터 분리된 균주가 API 분석과 16S rRNA 염기서열 분석에서 모두 높은 상동성을 나타내어 Leu. mesenteroides로 최종 동정되었으며, 이는 갓김치가 프로바이오틱 잠재성을 지닌 식물유래 식물 유래 유산균 후보를 확보할 수 있는 공급원이 될 가능성을 시사한다. 또한 제조된 CFS의 pH가 4.159를 나타낸 것은 배양 과정에서 유기산이 충분히 생성되었음을 의미하며, 이후 수행한 항균 활성 평가에서 관찰된 병원성 미생물의 생육 억제 효과와도 밀접한 관련이 있을 것으로 판단된다. 유산균이 생성하는 유산, 초산 및 박테리오신과 같은 대사산물은 병원성 세균의 생육을 억제하는 주요 요인으로 알려져 있어, 본 연구에서 제조된 CFS 역시 이러한 기능성 대사산물을 포함하고 있을 가능성이 높다.
용혈 활성은 프로바이오틱 균주의 안전성을 평가하는 중요한 지표로, 적혈구를 용해하는 용혈성 균주는 병원성을 나타낼 가능성이 있으므로 식품 및 산업적 이용을 위해서는 비용혈성(non-hemolytic) 특성이 요구된다. 적혈구의 용혈이 발생하면 산소 운반 능력이 저하되어 생체 내에 심각한 영향을 미칠 수 있는 것으로 알려져 있다[25]. 따라서 본 연구에서는 갓김치로부터 분리한 Leu. mesenteroides의 안전성을 확인하기 위하여 용혈 활성을 평가하였다. 용혈 활성 평가 결과, Leu. mesenteroides는 blood agar에서 colony 주변에 투명한 용혈환(β-용혈)이나 녹색의 부분 용혈(α-용혈)이 관찰되지 않았으며, 용혈이 나타나지 않는 γ-용혈 양상을 보였다(Fig. 1A). 이러한 결과는 안전성이 확인된 대조균주인 Lactobacillus delbrueckii subsp. bulgaricus KCCM 35463의 결과(Fig. 1B)와 동일한 양상을 나타내었다. γ-용혈은 적혈구를 용해하지 않는 비용혈성 특성을 의미하며, 프로바이오틱 균주의 안전성을 판단하는 중요한 기준으로 활용된다. 따라서 본 연구에서 분리한 Leu. mesenteroides는 비용혈성을 나타내어 용혈성 측면의 안전성 요건을 충족하였으며, 기능성 발효 식품 및 잠재적 프로바이오틱 소재로 활용될 가능성을 보였다. 그러나 균주의 전반적인 안전성을 확립하기 위해서는 항생제 감수성, 독성 및 병원성 관련 인자 등에 대한 추가 평가가 필요하다.
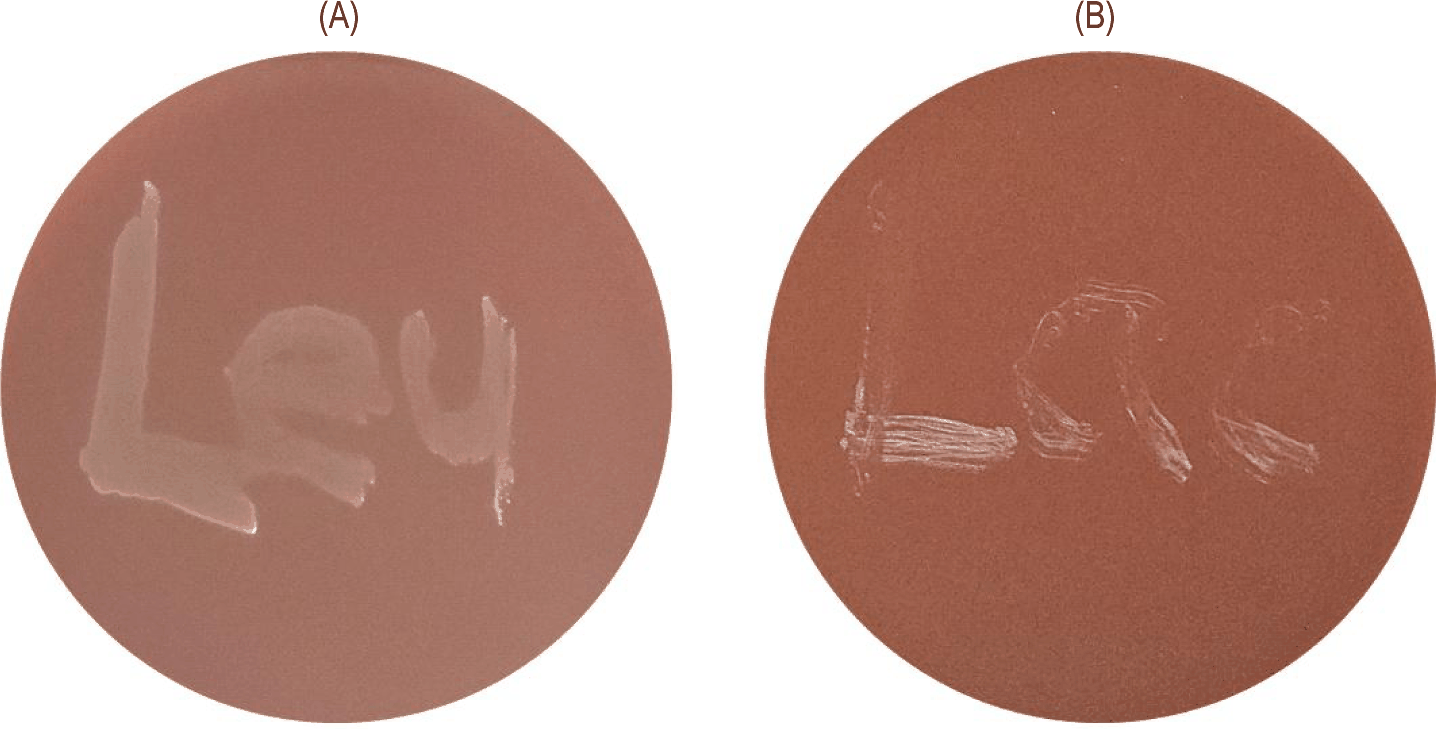
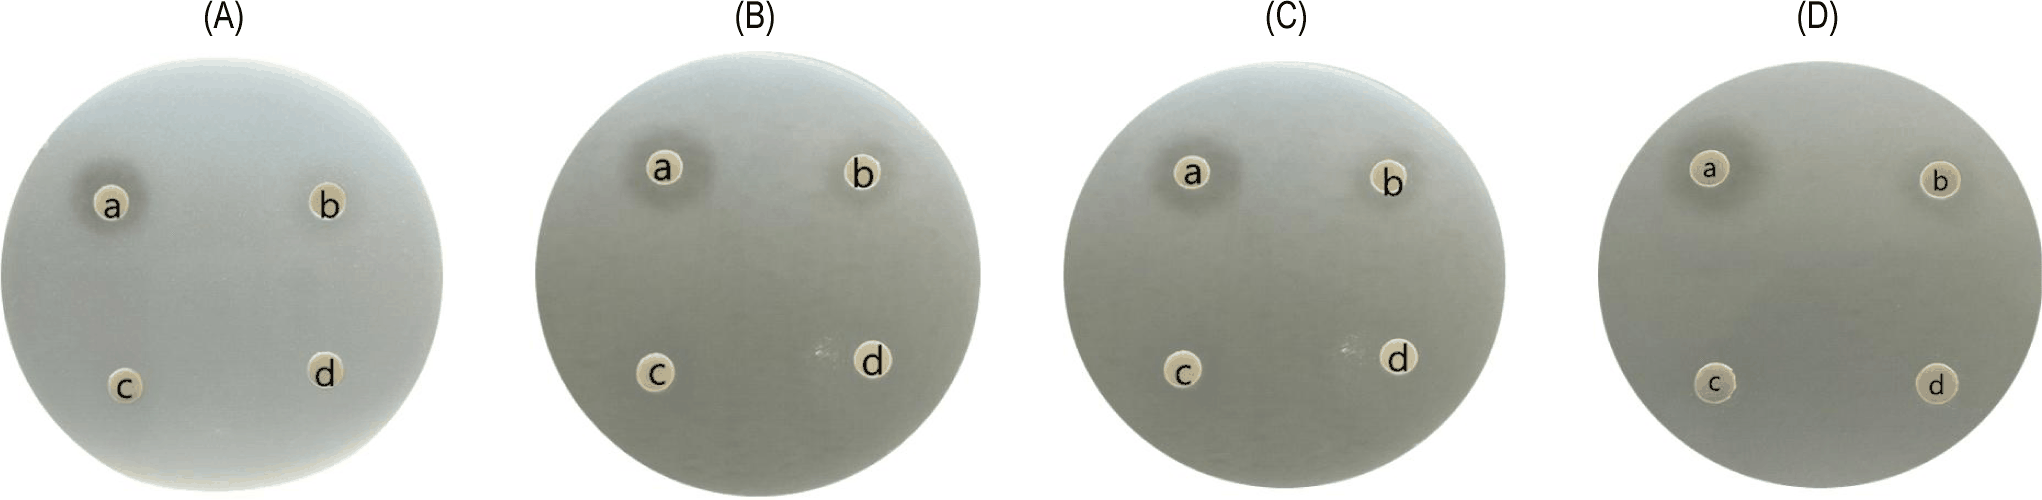
갓김치에서 분리한 Leu. mesenteroides의 항균 활성은 배양 상등액인 CFS를 이용한 paper disc 확산법으로 평가하였으며, 그 결과를 Fig. 2에 나타내었다. 시험균주로는 Escherichia coli KCCM 11569(Fig. 2A), KCCM 11587(Fig. 2B), KCCM 11596(Fig. 2C) 및 KCCM 11600(Fig. 2D)을 사용하였다. 모든 시험균주에서 Leu. mesenteroides의 CFS는 E. coli의 생육을 억제하는 활성을 나타내었으며, CFS의 농도가 증가할수록 생육저해환의 크기가 증가하는 경향을 보였다(Fig. 2). 특히 원액(Fig. 2A)과 50% 희석액(Fig. 2B)에서 뚜렷한 항균 활성이 관찰되었으며, 저농도 처리구에서는 상대적으로 낮은 항균 활성을 나타내었다. 이러한 결과는 Leu. mesenteroides가 생성한 대사산물이 E. coli의 생육을 효과적으로 억제할 수 있음을 시사한다. 본 연구 결과는 김치 유래 Leu. mesenteroides LK93 균주의 배양 상등액이 E. coli에 대해 우수한 항균 활성을 나타낸다고 보고한 Park et al.[26]의 연구와 일치하였다. 이들은 항균 효과가 배양 상등액에 존재하는 다양한 대사산물에 의해 유도된 것으로 보고하였다. 또한 Leu. mesenteroides는 유산, 초산 등의 유기산과 박테리오신(bacteriocin)을 비롯한 항균성 물질을 생성하는 것으로 알려져 있으며, 이러한 물질들은 병원성 세균의 세포막 투과성을 증가시키고 세포 내 pH 항상성을 교란하거나 세포막을 손상시켜 생육을 억제하는 것으로 보고되고 있다[27]. 따라서 본 연구에서 갓김치 유래 Leu. mesenteroides가 생성한 CFS는 병원성 E. coli의 생육을 효과적으로 억제하는 항균 활성을 나타내었으며, 이는 본 균주가 기능성 발효식품의 starter culture뿐만 아니라 천연 항균 소재 또는 포스트바이오틱(postbiotic) 소재로 활용될 수 있는 가능성을 시사한다.
갓김치로부터 분리·동정한 Leu. mesenteroides의 내산성을 평가한 결과를 Fig. 3에 나타내었다. 균주를 MRS broth에서 12 h 동안 배양한 후, 배양액의 pH를 1 N HCl을 이용하여 2.0으로 조정하고 120 min 동안 노출시킨 후 생균수를 측정하였다. 배양 12 h 후 Leu. mesenteroides의 생균수는 10.5 log CFU/mL였으며, pH 2.0에서 120 min 동안 처리한 후에도 5.0 log CFU/mL의 생균수가 유지되었다(Fig. 3). 비록 산 처리 후 생균수가 감소하였으나, 5.0 log CFU/mL 이상의 생균이 생존하여 본 균주는 강산성 환경에서도 비교적 높은 생존성을 유지하는 것으로 확인되었다.
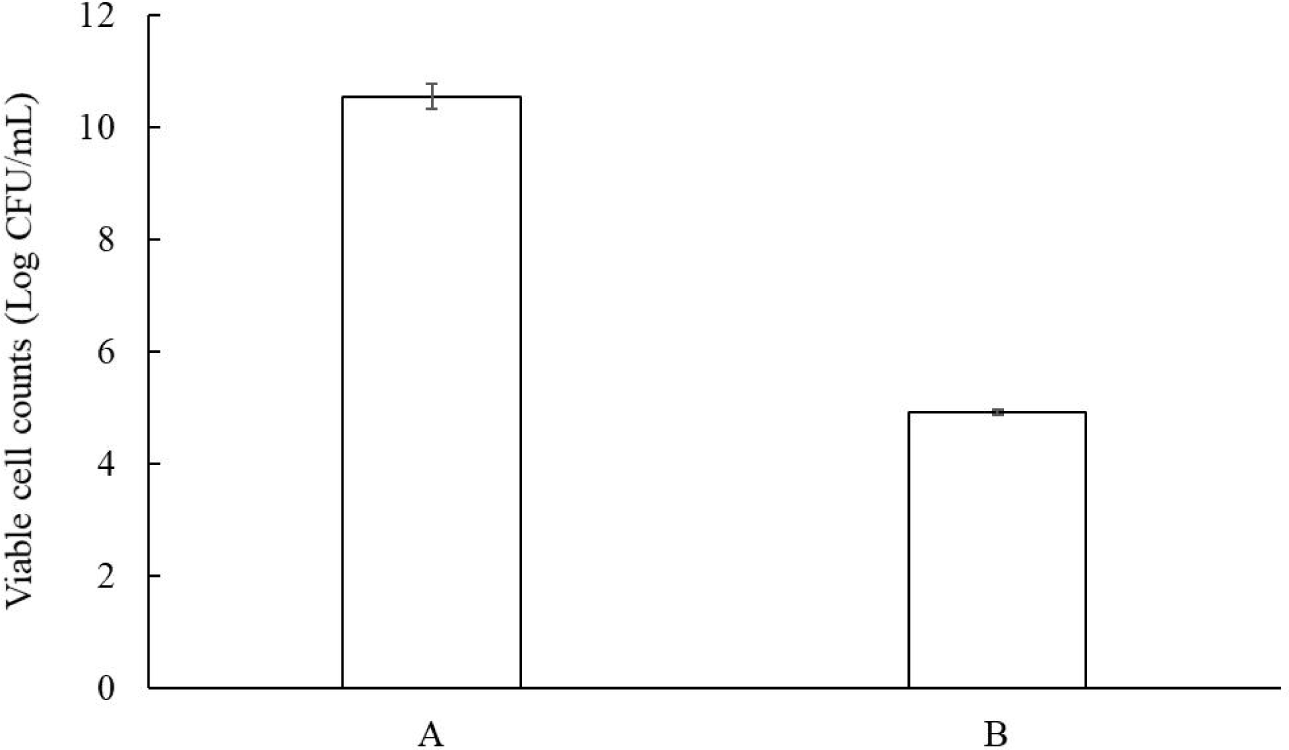
프로바이오틱 균주의 내산성은 위 내의 강한 산성 환경을 통과하여 장관에 도달할 수 있는지를 평가하는 중요한 지표로 알려져 있다[28,29]. 따라서 pH 2.0 조건에서도 높은 수준의 생균수가 유지된 본 연구 결과는 Leu. mesenteroides가 위산 환경을 견디고 장까지 생존할 수 있는 잠재적인 프로바이오틱 특성을 보유하고 있음을 시사한다. 본 연구실의 이전 연구에서도 블루베리로부터 분리한 L. argentoratensis가 동일한 산성 조건에서 높은 생존율을 나타내어 우수한 내산성을 보유하고 있음을 보고한 바 있다[3]. 이러한 결과를 종합하면 본 연구에서 분리한 Leu. mesenteroides는 강산성 조건에서 생존성을 유지하여 기능성 발효식품 및 프로바이오틱 소재로 활용될 잠재성을 보였다. 그러나 프로바이오틱 후보 균주로서의 적합성을 보다 충분히 평가하기 위해서는 담즙산 내성, 장 상피세포 부착능 및 추가적인 기능성 시험이 필요하다.
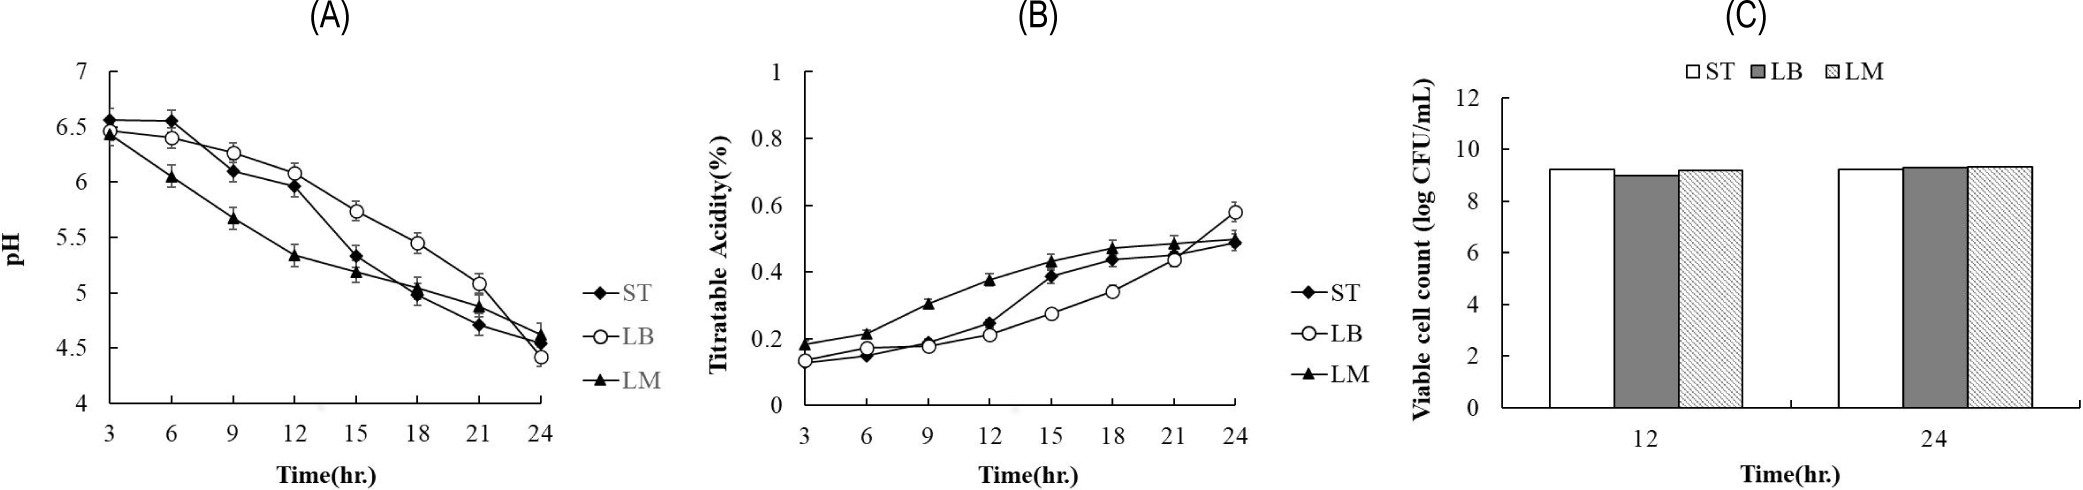
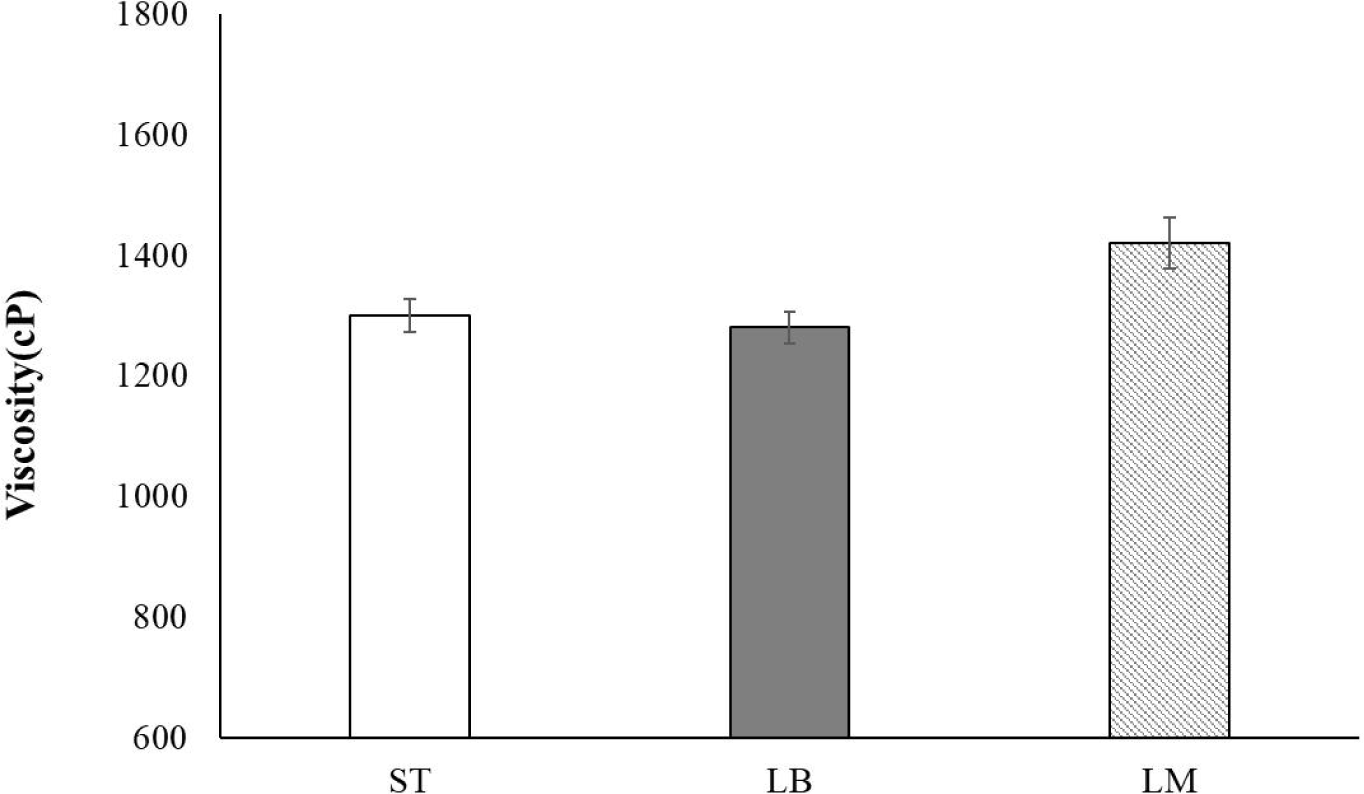
갓김치로부터 분리한 Leu. mesenteroides의 발효유 starter culture로서의 활용 가능성을 평가하기 위하여 우유에 단독 접종한 후 발효 과정에서의 pH, TA 및 생균수의 변화를 조사하였으며, 그 결과를 Fig. 4에 나타내었다. 비교 균주로는 Streptococcus thermophilus KCCM 40430(ST)과 Lactobacillus delbrueckii subsp. bulgaricus KCCM 35463(LB)을 사용하였으며, 각 균주는 MRS broth에서 24 h 동안 예비 배양한 후 우유에 2%(v/v)씩 접종하여 37℃에서 24 h 동안 발효하였다. 발효가 진행됨에 따라 모든 처리구에서 pH가 점차 감소하여 정상적인 젖산 발효가 이루어졌음을 확인할 수 있었다. 배양 24 h 후 pH는 S. thermophilus가 4.54, L. bulgaricus가 4.42, Leu. mesenteroides가 4.62로 나타났으며(Fig. 4A), Leu. mesenteroides는 상업적으로 이용되는 starter 균주들과 유사한 산 생성 능력을 보였다. TA 역시 발효가 진행됨에 따라 증가하였으며, 배양 24 h 후 각각 S. thermophilus 0.49%, L. bulgaricus 0.58%, LM 0.50%로 측정되어(Fig. 4B) Leu. mesenteroides가 발효유 제조에 적합한 산 생성 특성을 갖는 것으로 확인되었다. 발효 과정 중 생균수의 변화는 Fig. 4C에 나타내었다. 배양 12 h 후 생균수는 S. thermophilus가 9.21 log CFU/mL, L. bulgaricus가 9.00 log CFU/mL, Leu. mesenteroides가 9.12 log CFU/mL를 나타내었다. 이후 24 h에는 각각 9.22, 9.28 및 9.33 log CFU/mL로 증가하거나 안정적으로 유지되어 모든 균주에서 높은 생균수를 유지하였다. 특히 Leu. mesenteroides는 발효 종료 시 가장 높은 생균수를 나타내어 우유 환경에서도 우수한 증식 능력을 갖는 것으로 판단되었다. Lee et al.[30]은 국내 시판 발효유의 pH가 3.7–4.7, TA가 0.36%–0.91%의 범위를 나타낸다고 보고하였다. 본 연구에서 제조한 Leu. mesenteroides 발효유의 pH와 TA는 이러한 범위 내에 포함되어 상업적으로 생산되는 발효유와 유사한 발효 특성을 나타내었다. 또한 S. thermophilus와 L. delbrueckii subsp. bulgaricus는 발효 과정에서 서로의 성장에 필요한 대사산물을 교환하여 산 생성 속도를 증가시키는 것으로 알려져 있다[31]. 이러한 점을 고려하면, 본 연구에서 분리한 Leu. mesenteroides 역시 다른 starter 균주와의 혼합 배양 시 상호 보완적인 생육과 발효 촉진 효과를 나타낼 가능성이 있을 것으로 판단된다. 발효 기간 동안 생균수가 높은 수준으로 유지된 결과는 발효유 제조 과정에서 유산균이 대수증식기를 거쳐 정체기에 도달한 이후에도 일정 수준 이상의 생존성을 유지하였음을 의미한다. Bae et al.[32]은 발효 후기에는 일부 균체가 사멸하더라도 유기산 생성은 지속될 수 있으므로 pH 및 TA의 변화가 반드시 생균수의 변화와 일치하지 않는다고 보고하였다. 본 연구에서도 생균수는 큰 변화를 보이지 않았으나 pH 감소와 TA 증가는 지속적으로 나타나 선행연구와 유사한 경향을 보였다. 한편, 「식품의 기준 및 규격」에서는 발효유의 유산균 수를 6 log CFU/mL 이상으로 규정하고 있으며, Lee et al.[30]은 시판 호상 발효유의 생균수가 호기성 유산균은 7.2–11.30 log CFU/mL, 혐기성 유산균은 8.0–11.50 log CFU/mL의 범위를 나타낸다고 보고하였다. 본 연구에서 LM을 단독 접종하여 제조한 발효유는 발효 종료 후에도 9 log CFU/mL 이상의 생균수를 유지하여 국내 품질 기준을 충분히 만족하였으며, 시판 발효유와 비교하여도 유사한 수준의 생균수를 나타내었다. 따라서 Leu. mesenteroides는 발효유 starter culture로 활용 가능한 균주로 판단된다. 발효 완료 후 단일 균주를 이용하여 제조한 발효유의 점도를 측정한 결과를 Fig. 5에 나타내었다. ST, LB 및 LM의 점도는 각각 1,300, 1,280 및 1,420 cP로 측정되었으며, LM 처리구가 가장 높은 점도를 나타내었다. 발효유의 점도는 균주의 조합, 산 생성 능력 및 단백질 분해 특성 등에 의해 영향을 받는 것으로 알려져 있다[33,34]. Bouzar et al.[35]은 S. thermophilus와 L. bulgaricus를 이용한 발효유에서 발효 시간이 증가함에 따라 점도가 증가하여 24 h에서 최댓값을 나타낸다고 보고하였다. 또한 Jeong et al.[14]은 여러 유산균을 혼합하여 제조한 발효유가 단일 균주 발효유보다 높은 점도를 나타내며, 특히 Bifidobacterium longum, Lactobacillus acidophilus 및 S. thermophilus를 혼합한 처리구에서 가장 우수한 점도 특성을 보였다고 보고하였다. 본 연구에서도 Leu. mesenteroides를 이용한 발효유가 대조균주보다 높은 점도를 나타내어, 본 균주가 우수한 조직감 형성 능력을 갖는 starter culture로 활용될 가능성을 확인하였다.
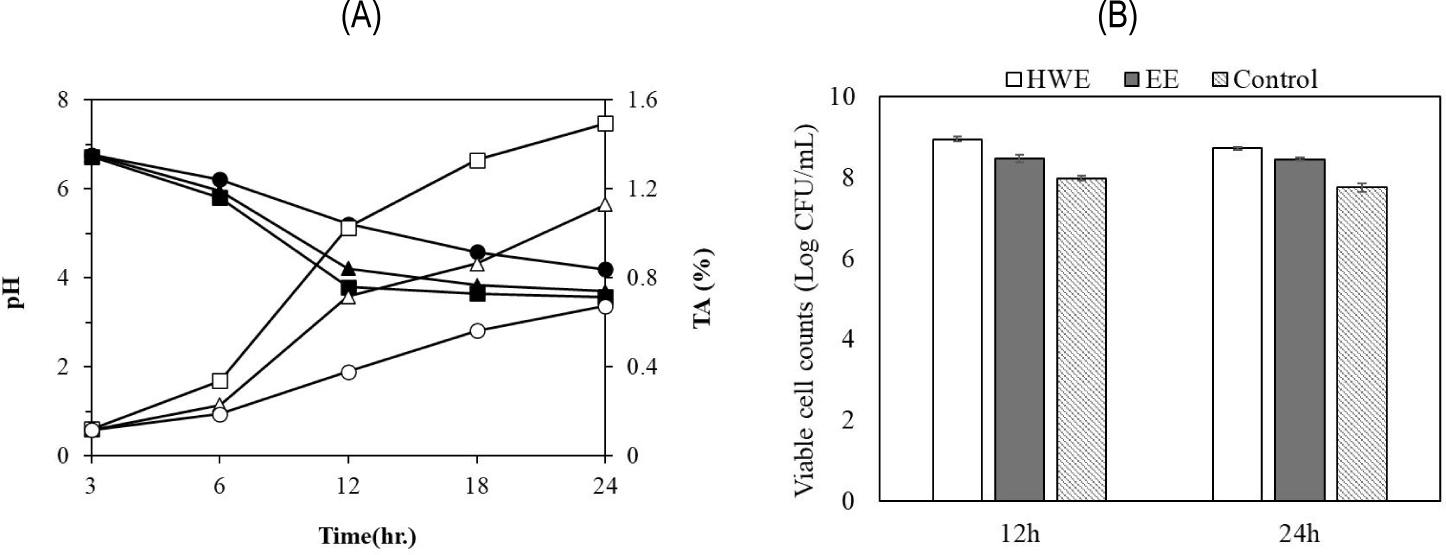
갓 추출물 첨가가 발효유의 발효 특성에 미치는 영향을 평가하기 위하여 발효 과정 중 pH와 TA의 변화를 측정한 결과를 Fig. 6A에 나타내었다. 발효 초기(3 h)에는 모든 처리구에서 pH가 약 6.7로 유사하게 나타났으나, 발효가 진행됨에 따라 점진적으로 감소하였다. 배양 24 h 후 pH는 HWE, EE 및 무첨가 대조구에서 각각 3.57, 3.70 및 4.20으로 측정되었다. 특히 HWE 처리구는 가장 낮은 pH를 나타내어 발효가 가장 활발하게 진행된 것으로 확인되었다. TA는 pH 변화와 반대의 양상을 나타내며 발효가 진행될수록 지속적으로 증가하였다(Fig. 6A). 배양 24 h 후 TA는 HWE 처리구가 1.50%, EE 처리구가 1.13%, 대조구가 0.68%로 측정되어, 갓 HWE가 유산균의 산 생성 능력을 가장 효과적으로 촉진하는 것으로 나타났다. 이러한 결과는 식물 추출물에 함유된 수용성 탄수화물과 폴리페놀 화합물이 유산균의 대사를 활성화하여 젖산 생성을 촉진한다는 기존 연구와 일치하였다[36,37]. 또한 Plaskova & Mlcek[38]은 식물 유래 HWE 또는 EE가 발효유 및 치즈 제조 과정에서 발효 시간을 단축하고 산 생성을 증가시킨다고 보고하였으며, 본 연구에서도 갓 추출물에서 유사한 경향이 확인되었다. 특히 HWE 처리구가 EE 처리구보다 우수한 발효 특성을 나타낸 것은 선행연구를 고려할 때 열수 추출과정에서 용출될 수 있는 수용성 성분이 YC-380 starter culture의 생육과 대사에 기여했을 가능성이 있다. 또한 십자화과 식물에 함유된 글루코시놀레이트와 그 분해산물은 유산균에 의해 대사되어 발효를 촉진할 수 있으며, 이 과정에서 생성되는 다양한 대사산물이 유산균의 성장과 산 생성에 긍정적인 영향을 미치는 것으로 보고되었다[39]. 발효 과정 중 생균수의 변화를 Fig. 6B에 나타내었다. 배양 12 h 후 HWE, EE 및 대조구의 생균수는 각각 8.95, 8.47 및 7.98 log CFU/mL로 측정되었으며, HWE 처리구는 대조구보다 약 0.97 log CFU/mL 높은 생균수를 나타내었다. 배양 24 h 후에는 각각 8.73, 8.45 및 7.75 log CFU/mL로 모든 처리구에서 생균수가 다소 감소하였으나, HWE와 EE 처리구는 대조구보다 높은 생균수를 지속적으로 유지하였다. 갓 추출물 첨가구에서 관찰된 생균수 증가는 선행연구에 근거할 때 추출물의 수용성 성분과 폴리페놀 화합물 등이 유산균의 증식에 기여했을 가능성이 있다. 일반적으로 프리바이오틱 물질은 유익 미생물의 선택적 성장 기질로 이용되며, 이눌린과 프럭토올리고당(fructooligosaccharides)은 대표적인 유산균 증식 촉진 물질로 알려져 있다[40,41]. 본 연구에서도 열수 추출 과정에서 용출되었을 가능성이 있는 수용성 성분들이 YC-380의 증식과 생존에 기여했을 수 있으나, 이를 확인하기 위해서는 추출물의 성분분석과 개별 성분별 검증 등의 추가적인 연구가 필요하다. 배양 24 h 이후 일부 생균수 감소는 발효 후기의 영양소 고갈과 유기산 축적에 따른 산성 스트레스에 기인한 것으로 판단된다. 그러나 갓 추출물을 첨가한 처리구에서는 감소 폭이 상대적으로 작게 나타났으며, 이는 선행연구에서 보고된 식물 유래 항산화 성분의 작용과 관련되었을 가능성이 있으나[20,39], 본 연구에서는 산화스트레스 관련 지표를 직접 측정하지 않아 추가적인 검증이 필요하다. 종합하면, 갓 추출물, 특히 HWE은 발효유 제조 과정에서 pH 감소, TA 증가 및 생균수 향상을 동시에 유도하여 발효 특성을 효과적으로 개선하였다. 또한 발효 종료 후에도 8 log CFU/mL 이상의 생균수를 유지하여 프로바이오틱 발효유의 권장 기준인 106 CFU/mL 이상을 충분히 충족하였다[42]. 이러한 결과는 갓 열수추출물이 기능성 발효유 제조를 위한 천연 발효 촉진제이자 프리바이오틱 소재로 활용될 수 있음을 시사한다.
갓 추출물 첨가가 발효유의 점도에 미치는 영향을 평가한 결과를 Fig. 7에 나타내었다. 발효 24 h 후 점도는 EE 처리구가 4,233.33 cP로 가장 높았으며, HWE 처리구와 무첨가 대조구는 각각 3,815.67 cP 및 3,506.67 cP를 나타내었다. EE 처리구는 대조구보다 약 20%, HWE 처리구는 약 9% 높은 점도를 나타내어, 갓 추출물의 첨가가 발효유의 점도 향상에 긍정적인 영향을 미치는 것으로 확인되었다. 발효유의 점도 증가는 선행연구를 고려할 때 갓 추출물 유래 성분과 카제인 미셀의 상호작용에 관련되었을 가능성이 있다. 그러나 본 연구에서는 추출물의 성분 조성과 단백질-성분 간 상호작용을 직접 분석하지는 않았다. 폴리페놀 화합물은 카제인과 수소결합, 소수성 상호작용 및 정전기적 상호작용을 통해 복합체를 형성하며, 이러한 상호작용은 단백질의 2차 및 3차 구조를 변화시켜 보다 치밀한 겔 구조를 형성하는 것으로 알려져 있다[43,44]. 특히 이소티오시아네이트와 같은 소수성 화합물은 카제인의 소수성 아미노산 잔기와 상호작용하여 미셀 간 가교결합을 촉진하고, 산 유도 겔화(acid-induced gelation) 과정에서 단백질 네트워크를 더욱 견고하게 형성하는 것으로 보고되었다[45].
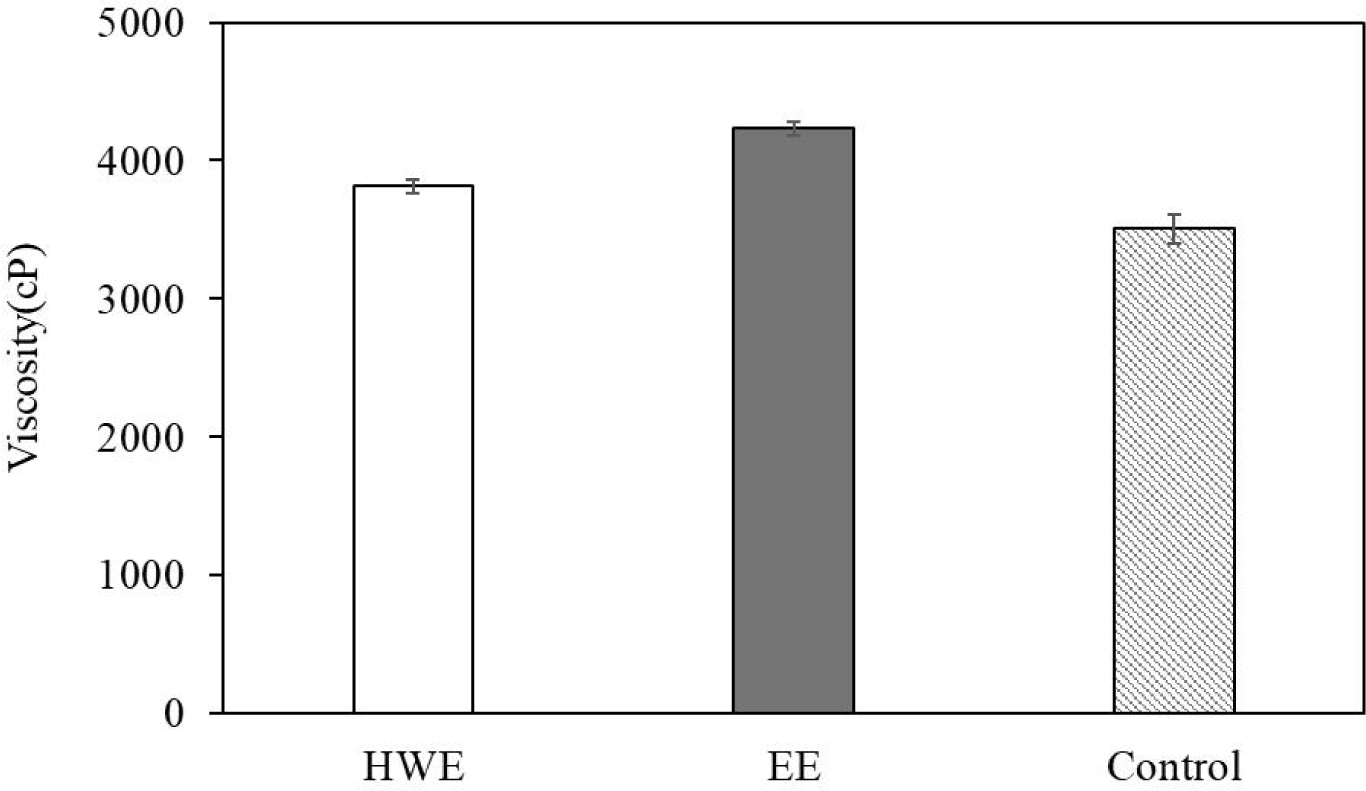
본 연구에서 EE 처리구가 가장 높은 점도를 나타낸 것은 선행연구에 근거할 때 에탄올로 추출될 수 있는 소수성성분과 카제인 미셀 간 상호작용에 관련되었을 가능성이 높다. 반면 HWE 처리구에서도 대조구보다 높은 점도가 관찰되었으며, 이는 선행 연구에 비추어 열수 추출 과정에서 용출될 수 있는 수용성 성분과 단백질 간 상호작용에 관련되었을 가능성이 있다[43]. 또한 식물 추출물은 유산균의 단백질분해 활성에도 영향을 미쳐 발효 과정에서 생성된 저분자 펩타이드가 카제인 미셀 표면에 추가적인 결합 부위를 제공함으로써 점도와 조직감을 향상시키는 것으로 보고되고 있다[46,47]. 따라서 갓 추출물이 발효유의 물리적 특성에 미친 영향에는 단백질-폴리페놀 상호작용이나 발효 과정에서의 단백질 대사 변화가 관여했을 가능성이 있다. Kristo et al.[48]은 상업용 set yogurt의 점도가 수천 cP 범위에서 소비자의 조직감과 기호도에 중요한 영향을 미친다고 보고하였다. 본 연구에서 EE 처리구는 상업용 발효유와 유사하거나 그 이상의 점도를 나타내어 우수한 조직감을 형성하였다. 따라서 갓 EE는 발효유의 점도와 조직감을 향상시키는 기능성 소재로 활용 가능성이 높으며, 프리미엄 발효유 제조를 위한 천연 첨가제로서의 활용 가치가 있을 것으로 판단된다.
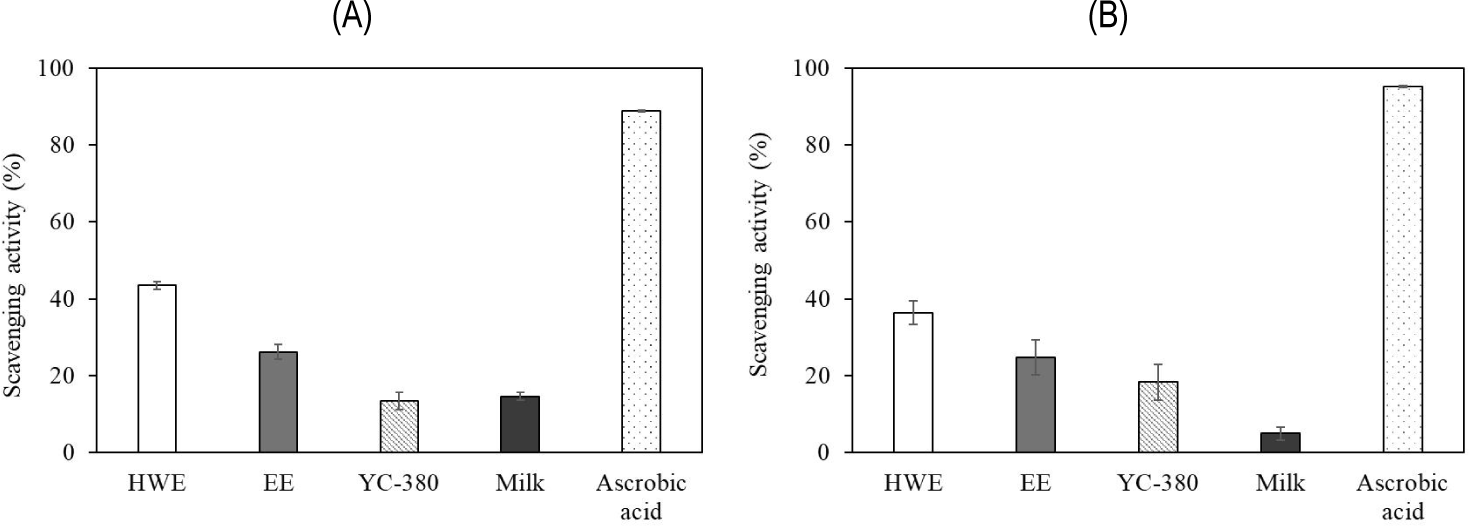
갓 추출물 첨가가 발효유의 항산화 활성에 미치는 영향을 평가하기 위하여 DPPH 및 ABTS 라디칼 소거능을 측정하였으며, 그 결과를 Fig. 8에 나타내었다. DPPH 라디칼 소거능은 HWE 처리구에서 43.44%로 가장 높게 나타났으며, EE 처리구와 무첨가 대조구는 각각 26.15% 및 13.36%를 나타내었다(Fig. 8A). 특히 HWE 처리구는 대조구보다 약 3배 높은 DPPH 라디칼 소거능을 보여 우수한 항산화 활성을 나타내었다. ABTS 라디칼 소거능 역시 DPPH와 유사한 경향을 보였다(Fig. 8B). HWE 처리구는 36.32%, EE 처리구는 24.79%, 대조구는 18.34%를 나타내어 HWE 첨가에 의해 가장 높은 항산화 활성이 확인되었다. HWE에서 높은 항산화 활성이 나타난 것은 선행연구에서 보고된 수용성 페놀성 화합물과 글루코시놀레이트 유도체의 존재와 관련되었을 가능성이 높다. 갓을 비롯한 Brassica 속 식물에는 시니그린(sinigrin), 클로로겐산(chlorogenic acid), 케르세틴(quercetin) 등 다양한 생리활성 물질이 존재하며, 이들 화합물은 활성산소를 제거하고 DPPH 및 ABTS 라디칼과 직접 반응하여 높은 항산화 활성을 나타내는 것으로 보고되었다[8,39]. 또한 Escrivá et al.[20]은 겨자 유래 소재를 이용한 유산균 발효 과정에서 폴리페놀의 생체이용률과 항산화 활성이 증가한다고 보고하였으며, 본 연구에서도 유사한 경향이 확인되었다. 흥미롭게도 EE 처리구는 발효유의 점도에서는 가장 우수한 결과를 나타냈지만, 항산화 활성은 HWE 처리구보다 낮게 측정되었다. 이는 선행연구를 고려할 때 에탄올로 추출될 수 있는 소수성 성분의 발효유 매트릭스 내 용해 및 분산 특성과 관련되었을 가능성이 있다[38]. 반면 HWE 처리구의 높은 DPPH 및 ABTS 소거능은 선행연구에서 보고된 수용성 항산화 성분의 분포 및 반응성과 관련되었을 가능성이 있다[20]. 이상의 결과는 추출 용매의 선택이 식물 추출물의 기능성 발현뿐만 아니라 발효유 내 유산균, 단백질 및 식물 유래 생리활성 물질 간의 상호작용에도 중요한 영향을 미친다는 것을 시사한다. 또한 갓 추출물은 발효유의 기능성과 물성을 동시에 향상시키는 천연 기능성 소재로 활용 가능성이 높으며, HWE은 항산화 활성 증진에, EE은 점도와 조직감 개선에 각각 효과적인 특성을 나타내었다. 최근 식물 추출물을 발효유에 적용한 연구에서는 항산화 활성 증가, 발효 시간 단축, 점도 향상 및 관능적 품질 개선 등의 효과가 보고되고 있다. Walter et al.[49]과 Hang et al.[18]은 다양한 식물 추출물의 첨가가 발효유의 총 폴리페놀 함량을 증가시키고 발효 시간을 단축하며, 적정 농도에서는 점도와 관능적 품질을 유의적으로 향상시킨다고 보고하였다. 본 연구 결과 역시 이러한 선행연구와 일치하며, 갓 추출물이 기능성 발효유 개발을 위한 유용한 천연 소재가 될 수 있음을 뒷받침한다.
결 론
본 연구에서는 갓김치로부터 유산균을 분리·동정하고, 프로바이오틱 관련 잠재 특성을 평가한 후 발효유 제조에 적용하여 갓 추출물이 발효 특성과 기능성에 미치는 영향을 조사하였다. 분리균은 API 50 CHL 및 16S rRNA 염기서열 분석을 통해 Leu. mesenteroides로 동정되었다. 또한 γ-용혈을 나타내어 안전성이 확인되었으며, 병원성 E. coli에 대해 우수한 항균 활성을 나타내었다. pH 2.0의 강산성 조건에서도 높은 생존성을 유지하여 우수한 내산성을 보였으며, 이는 위산 환경을 통과할 수 있는 잠재적인 프로바이오틱 특성을 시사하였다. Leu. mesenteroides를 단독 starter culture로 이용하여 제조한 발효유는 상업용 starter 균주와 유사한 pH, TA 및 생균수를 나타내었으며, 점도는 비교 균주보다 높은 수준을 보여 발효유 제조용 starter culture로서의 활용 가능성을 확인하였다. 갓 추출물의 첨가는 발효유의 품질 특성을 더욱 향상시켰다. 특히 HWE는 pH 감소, TA 증가 및 생균수 향상을 통해 발효를 효과적으로 촉진하였으며, DPPH 및 ABTS 라디칼 소거능에서도 가장 높은 항산화 활성을 나타내었다. 반면 EE는 발효유의 점도와 조직감을 가장 효과적으로 향상시켜 추출 용매에 따라 기능적 특성이 다르게 발현됨을 확인하였다. 이러한 차이는 선행연구를 고려할 때 추출 용매에 따라 회수될 수 있는 성분의 차이와 관련되었을 가능성이 있다. 그러나 본 연구에서는 각 추출물의 성분함량과 조성 및 작용기전을 직접 분석하지 않았다. 종합하면 갓김치에서 분리한 Leu. mesenteroides는 본 연구에서 확인한 비용혈성, 항균 활성 및 내산성에 근거하여 프로바이오틱 잠재성을 지닌 후보 균주이며, 발효유 starter culture로 활용 가능성을 보였다. 또한 갓 추출물은 발효유의 발효 특성, 생균수, 점도 및 항산화 활성을 효과적으로 향상시키는 천연 기능성 소재로 확인되었으며, HWE는 기능성 증진에, EE는 물성 개선에 각각 우수한 효과를 나타내었다. 따라서 갓김치 유래 Leu. mesenteroides와 갓 추출물의 병용은 기능성과 품질이 향상된 프로바이오틱 및 포스트바이오틱 발효유 개발을 위한 유용한 전략이 될 것으로 기대된다. 향후에는 본 균주의 담즙산 내성, 장 상피세포 부착능, 항생제 감수성, 독성 및 병원성 관련 인자 등 추가적인 안전성, 기능성 평가가 필요하다. 아울러 갓 추출물의 주요 생리활성 성분에 대한 정량 및 조성분석, 발효과정에서 생성되는 대사산물의 규명, 동물실험 및 인체 적용 연구를 통해 제안된 기능성과 작용기전을 추가로 검증할 필요가 있다.


