
서 론
요구르트는 유산균에 의해 발효된 대표적인 유제품으로서 우수한 영양학적 가치와 함께 다양한 생리활성을 지니고 있어 전 세계적으로 널리 소비되고 있다. 유산균 발효 과정은 유당을 젖산으로 전환하여 제품의 저장성을 향상시키고 독특한 풍미와 조직감을 형성하는 데 중요한 역할을 한다. 또한 요구르트에 포함된 유산균은 장내 미생물 균형 유지 및 건강 증진에 긍정적인 영향을 미치는 것으로 보고되고 있다[1–3].
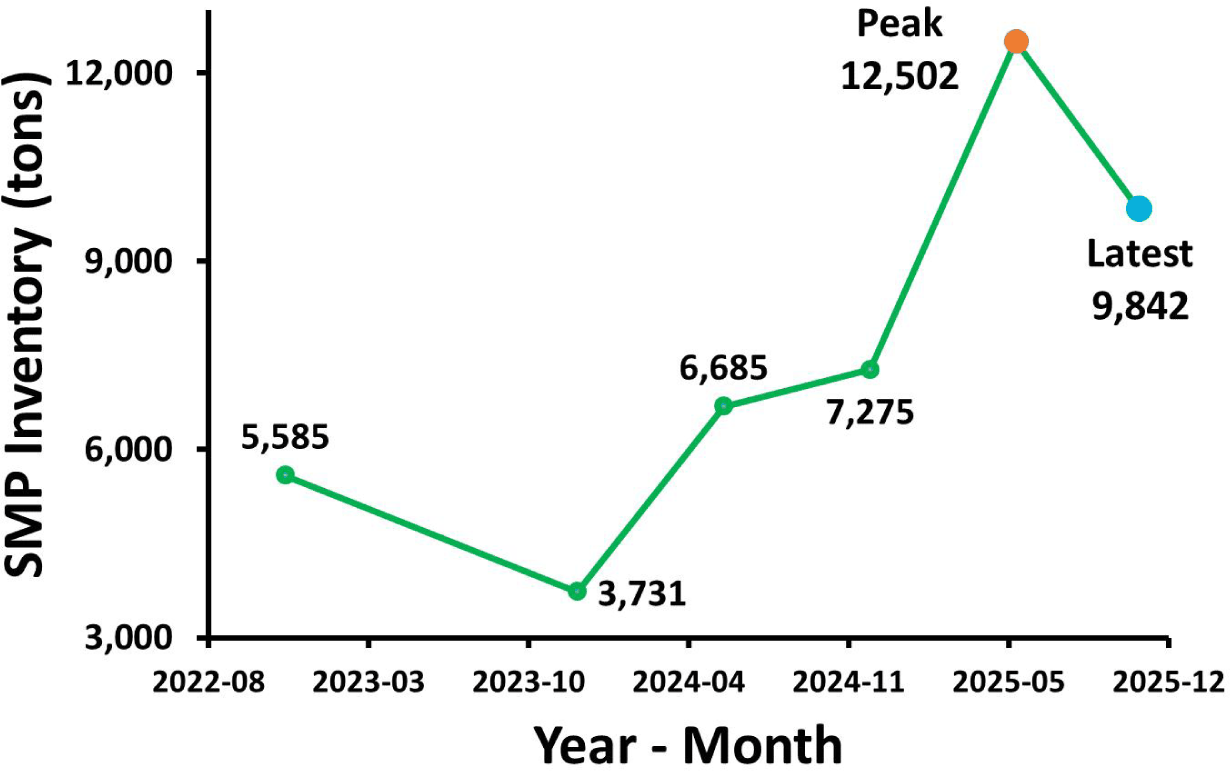
한편, 낙농진흥회 통계에 따르면 최근 유제품 산업에서는 탈지분유(skim milk powder)의 생산 증가 및 소비 감소로 인해 재고가 지속적으로 증가하는 문제가 제기되고 있다(Fig. 1)[4]. 탈지분유는 유당과 단백질이 풍부하여 발효 기질로서 우수한 특성을 지니고 있으나[5], 활용 범위가 제한적일 경우 재고 누적에 따른 산업적 부담이 발생할 수 있다. 따라서 탈지분유의 효율적인 활용을 위한 새로운 발효 제품 개발 및 응용 기술의 확보가 필요하다. 이러한 측면에서 탈지분유를 다양한 식물성 소재와 혼합하여 새로운 발효 제품으로 활용하는 접근은 탈지분유의 활용도를 높이는 동시에 새로운 기능성 발효 식품 개발 측면에서도 중요한 의미를 가진다.
최근 식물성 식품에 대한 소비자 관심 증가와 함께 두유와 같은 식물성 소재를 이용한 발효 식품 개발이 활발히 이루어지고 있다[6]. 대두는 단백질 함량이 약 35%–40%에 이르는 고단백 식물성 자원으로, 필수아미노산을 균형 있게 함유하고 있으며 이소플라본, 식이섬유 및 올리고당과 같은 다양한 생리활성 성분을 포함하고 있다. 그중에서도 국내산 백태는 황색 종피를 가진 식용 대두로서 단백질 함량이 높고 두부 및 두유 가공에 적합한 특성을 지닌다. 특히 단백질 추출 수율이 우수하고 이소플라본을 풍부하게 함유하고 있으며, 또한 발효 과정에서 생리활성 성분의 전환 가능성이 있어 유산균 발효 시스템에 적용하기에 적합한 소재로 평가된다.
두유는 이러한 대두 성분을 수용성 형태로 이용할 수 있는 대표적인 가공식품으로서, 두유가 포함된 발효 시스템에서는 유산균이 분비하는 β-glucosidase의 작용으로 인해, 두유 내 이소플라본이 glycoside 형태인 daidzin과 genistin에서 체내 흡수율이 높은 aglycone 형태인 daidzein과 genistein으로 전환된다[7]. 비당체 형태의 이소플라본은 배당체 대비 인체 내 흡수 속도가 빠르고 생체 이용률이 우수한 것으로 보고되었으며[8], 특히 Lactobacillus rhamnosus와 같은 β-glucosidase 생성능이 우수한 균주로 발효 시 DNA 손상 억제 및 항산화 활성이 유의미하게 증대됨이 입증되었다[9]. 최근 El-Shazly et al.의 연구에서도 프로바이오틱스 발효를 통해 이소플라본이 농축된 기능성 두유 요구르트 제조 가능성이 확인된 바 있다[10]. 그러나 두유는 유당을 포함하지 않기 때문에 유산균의 발효 기질로서 제한적일 수 있으며, 발효 과정에서 산 생성 속도 및 미생물 생육 특성이 우유와는 다른 양상을 나타낼 수 있다[11,12].
탈지분유와 두유를 혼합하여 발효할 경우, 탈지분유가 제공하는 유당 및 발효 친화적 환경과 두유가 제공하는 식물성 단백질 및 기능성 성분이 상호 보완적으로 작용하여 발효 특성 및 제품 품질을 동시에 개선할 수 있을 것으로 기대된다. 실제로 우유와 두유의 혼합 발효는 단백질 상호작용, 미생물 대사 및 기질 이용성의 변화 등을 통해 발효 특성과 품질 특성에 영향을 미치는 것으로 보고되고 있으며[13–15], 이를 통해 새로운 유형의 혼합 발효 제품 개발 가능성이 제시되고 있다.
그러나 현재까지 탈지분유와 두유를 혼합한 발효 시스템에서 혼합비에 따른 발효 특성 및 미생물 생육 변화를 체계적으로 분석한 연구는 제한적인 실정이다. 특히 혼합비에 따른 pH 변화, 적정산도 및 생균수 변화와 같은 발효 특성에 대한 기초적인 연구는 혼합 발효 요구르트의 제조 조건 설정 및 품질 최적화를 위해 필수적이다.
따라서 본 연구는 탈지분유와 두유 혼합 발효 요구르트의 특성 평가를 위한 연속 연구의 첫 번째 단계로서 탈지분유와 두유의 혼합비를 달리하여 요구르트를 제조하고, 발효 과정 중 pH, 적정산도 및 생균수의 변화를 분석함으로써 혼합비가 발효 특성 및 미생물 생육에 미치는 영향을 규명하고자 하였다. 또한 국내산 탈지분유와 국내산 대두를 활용하여 국내 낙농 자원 및 국산 농산물의 부가가치를 높이는 동시에 식물성 발효유의 한계를 극복하는 새로운 가능성을 확인하고자 한다.
재료 및 방법
탈지분유는 서울우유협동조합에서 생산된 1 kg 포장제품을 사용하였다. 환원탈지유는 단백질 함량이 약 5%가 되도록 13.38%(w/v)의 탈지분유를 증류수에 용해하여 제조하였다.
두유는 국내산 백태 품종의 대두를 사용하여 Buono et al.의 방법에 준하여 제조하였다[16]. 대두는 상온의 물(대두 중량의 2배, w/w)에 10시간 침지하여 최초 중량의 약 2.2배가 되도록 하였다. 이후 침지된 대두 중량의 2배(w/w)에 해당하는 95℃의 물을 가하여 습식 분쇄하였다. 습식 분쇄는 blender(Osterizer 16 speed blender, Oster, USA)를 사용하여 liquefy level에서 10분간 수행하였다. 생성된 slurry는 대두취 감소 및 살균을 위해 20분간 가열 후 냉각하였으며, 원료 대두 중량의 6배(w/w) 수율이 되도록 80 mesh cheese cloth로 여과하였다. 회수된 두유의 고형분 함량은 refractometer(Atago N 1, ATAGO, Japan)로 측정한 결과 11.0–12.0 °Bx였으며, 4℃에서 냉장 보관하여 1주일 이내에 실험에 사용하였다.
쌀당화액은 철원에서 생산된 오대 품종의 쌀을 20 mesh로 분쇄하여 제조하였다. 분쇄한 쌀에 6배(w/w)의 증류수를 가하여 가열한 후 α-amylase(A3051, Sigma-Aldrich, USA)를 0.15%(w/w) 첨가하여 80℃에서 1시간 액화하였다. 이후 60℃로 냉각한 다음 amyloglucosidase(A7255, Sigma-Aldrich)를 0.038%(w/w) 첨가하여 60℃에서 1시간 당화하였다. 당화액은 100 mesh 여과포로 여과한 후 증류수를 사용하여 당도를 8 °Bx로 조정하였으며, 사용 전까지 –20℃에서 보관하였다.
스타터는 국내 발효유제품 제조에 사용되는 상업용 혼합균주를 사용하였다. 혼합균주는 Lactobacillus acidophilus, Streptococcus thermophilus, Lactobacillus bulgaricus 및 Bifidobacterium longum으로 구성되었다.
각 성분의 배합비율은 전체 부피를 7로 하였을 때 쌀당화액의 비율을 2/7로 고정하였으며, 나머지 5/7에 해당하는 탈지분유와 두유의 비율을 달리하여 5가지 배합비율로 기질을 조성하였다. 모든 기질에서 쌀당화액의 비율은 동일하게 유지하였으므로 처리구명은 탈지분유와 두유의 혼합비만을 기준으로 표시하였다. 기질의 배합비율은 Table 1과 같다.
| Treatment | Skim milk powder | Soymilk |
|---|---|---|
| SM100 | 100 | 0 |
| SM75 | 75 | 25 |
| SM50 | 50 | 50 |
| SM25 | 25 | 75 |
| SM0 | 0 | 100 |
기질은 media bottle에 담아 100℃ 수조에서 15분간 간접살균한 후 상온에서 냉각하였다. 냉각된 기질은 37℃ 항온기에서 2시간 정치한 후 스타터를 0.02%(w/v) 수준으로 접종하였다. 발효는 37℃ 항온기에서 15–40시간 동안 수행하였으며, 발효 시간별 실험에서는 지정된 시간에 시료를 채취하였다.
pH는 pH meter(240 pH meter, Corning, USA)를 이용하여 측정하였다. 발효 종료 직후 시료를 채취하여 즉시 측정하였으며, 시간별 실험에서는 각 시간대별로 동일한 방법으로 측정하였다.
적정산도(titratable acidity)는 시료 9 g에 증류수 18 mL를 첨가한 뒤 0.1% phenolphtalein 0.1 mL를 첨가하고 0.1 N NaOH(f=1.000) 용액으로 적정하였으며, 결과는 젖산 함량(%, as lactic acid)으로 환산하였다. 적정산도는 pH 측정과 동일하게 발효 종료 직후 분석하였다.
발효 시간과 기질에 따른 유산균과 비피도박테리아의 생균수를 측정하였다. 유산균수는 BCP plate count agar(Eiken Chemical, Japan) 24.6 g을 1 L의 증류수에 용해시켜 멸균 후 배지로 사용하였고 시료는 멸균 생리식염수(0.85% NaCl)로 단계 희석한 후 평판배양법으로 측정하였다. 생균수는 37℃에서 48시간 배양한 후 집락수를 계수하여 CFU/mL로 나타내었다. 비피도박테리아는 BL agar(Difco Laboratories, USA) 58 g을 1 L의 증류수로 가열하며 용해시킨 후 멸균한 것을 배지로 사용하였는데, 이때 비피도박테리아 선택배양을 위하여 4종의 항생제가 첨가된 NPNL(neomycin, paromomycin, nalidixic acid and lithium chloride) supplement를 0.45 μm membrane filter로 여과한 후 배지 100 mL당 5 mL씩 첨가하였다. 비피도박테리아의 측정을 위한 시료 희석에는 KH2PO4 4.5 g, Na2HPO4 6.0 g, L-cysteine 0.5 g 및 Tween-80 0.5 g을 1 L에 용해하고 pH 7.0으로 조정한 희석액을 사용하였다. 도말 후 BBL anaerobic jar(Becton Dickinson, USA)에 BBL Gas-Pak(Beckton Dickinson, USA), indicator, catalyst를 넣어 혐기 조건에서 37℃, 48–72시간 배양한 후 집락을 계수하였다.
결 과
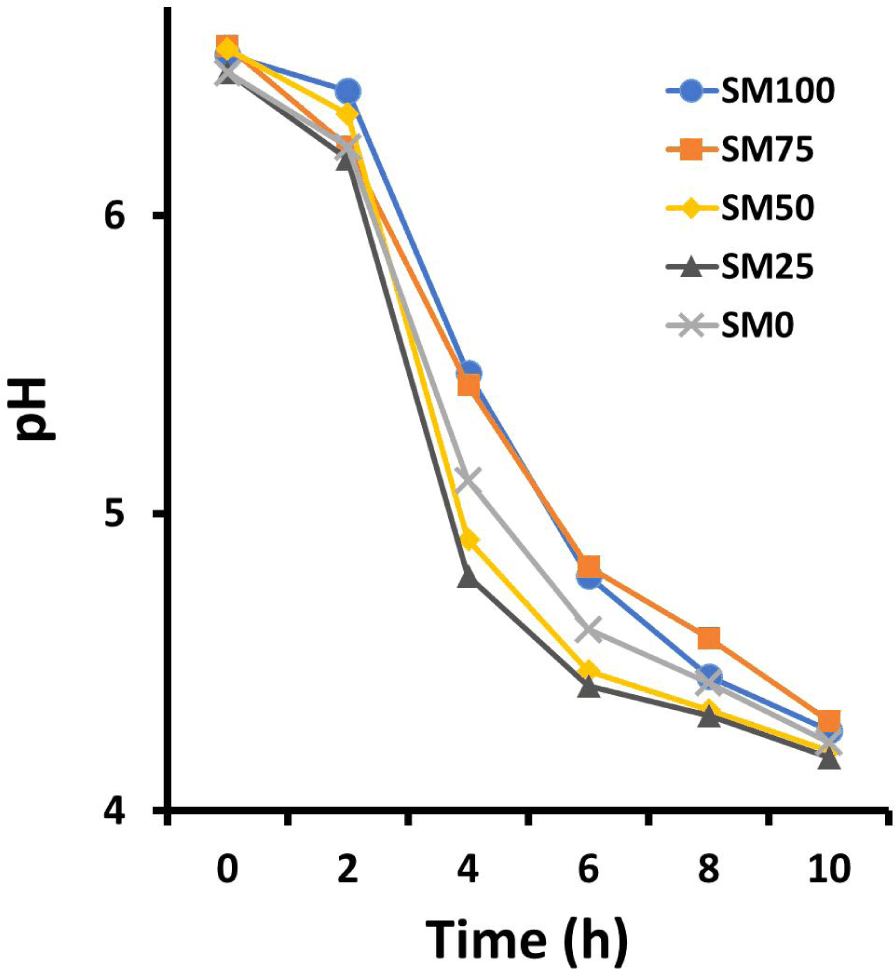
탈지분유와 두유의 혼합비에 따른 발효 과정 중 pH 변화를 Fig. 2에 나타내었다. 모든 처리구에서 발효가 진행됨에 따라 pH는 초기 약 6.5 내외에서 점차 감소하여 최종적으로 4.5 이하에 도달하였다. 혼합비에 따라 pH 감소 속도에는 차이가 나타났다. 요구르트 제품의 적정 pH는 약 4.5로 알려져 있는데[2], SM50 처리구는 약 6시간 부근에서 pH 4.6에 도달하여 가장 빠른 감소 양상을 보였으며, SM100과 SM75는 약 7–8시간 전후에 도달하였다. 반면 두유 비율이 높은 SM25 및 SM0 처리구는 pH 4.6 도달까지 약 8시간 이상 소요되었다. 특히 발효 4–8시간 구간에서 처리구 간 pH 감소 기울기 차이가 뚜렷하게 나타났다.
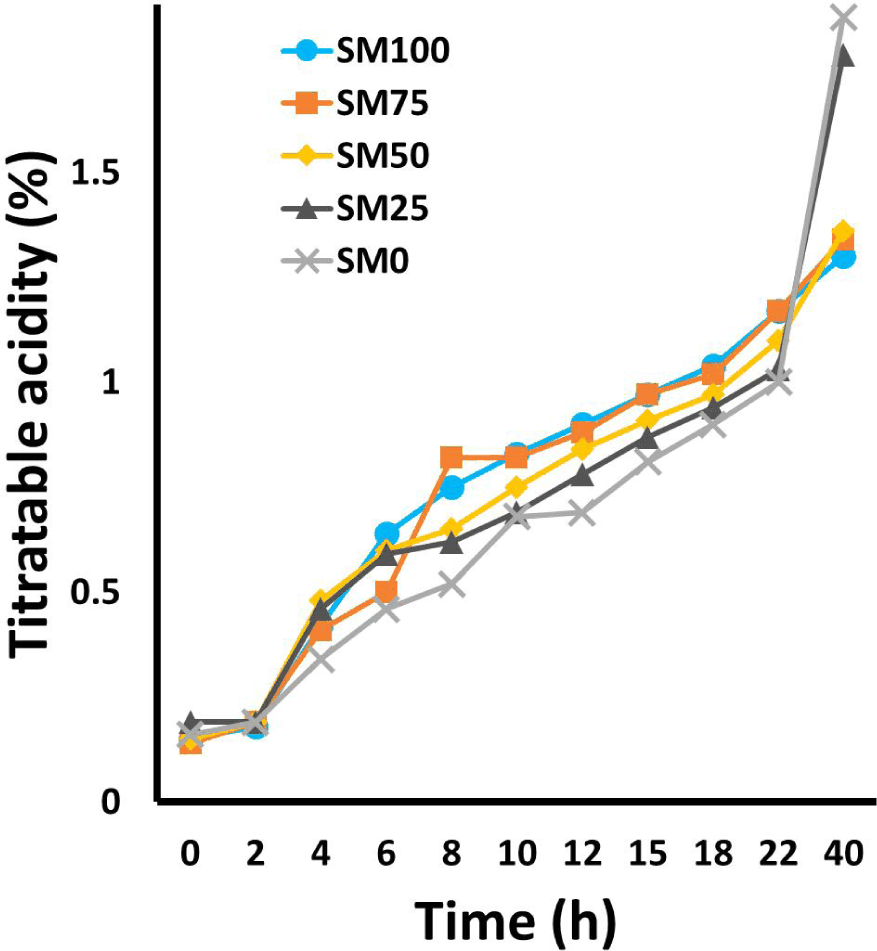
탈지분유와 두유 혼합비에 따른 발효 과정 중 적정산도의 변화를 Fig. 3에 나타내었다. 발효 초기 적정산도는 약 0.15%–0.20% 수준이었으며, 발효가 진행됨에 따라 점진적으로 증가하여 최종적으로는 0.80%–1.00% 범위에 도달하였다. SM100과 SM75 처리구는 발효 6시간 이후부터 급격한 증가를 나타내었으며, 발효 8시간 부근에서 약 0.70% 이상으로 상승하였다. 반면 SM25와 SM0 처리구는 동일 시간대에서 약 0.60% 내외로 상대적으로 낮은 값을 나타내어 산 생성 속도의 차이를 보였다. SM50 처리구는 발효 전반에 걸쳐 비교적 균형적인 증가 양상을 보였으며, 발효 6시간 부근에서 약 0.65% 수준을 나타내어 중간적인 경향을 보였다. 이러한 결과는 pH 감소 양상과 일치하였다.
발효 시간과 기질에 따른 유산균 및 비피도박테리아의 생균수 변화를 Fig. 4에 나타내었다. 초기 접종 농도는 약 107 CFU/mL 수준이었으며, 발효 4–8시간 구간에서 급격한 증가가 나타나 발효 후기에는 108 CFU/mL 이상으로 증가하였다. 유산균수는 SM100과 SM75에서 초기 증가 속도가 빠르게 나타났으며, SM50은 이와 유사한 증가 패턴을 보였다. 반면 SM25와 SM0는 초기 증가 속도가 상대적으로 완만하였다.
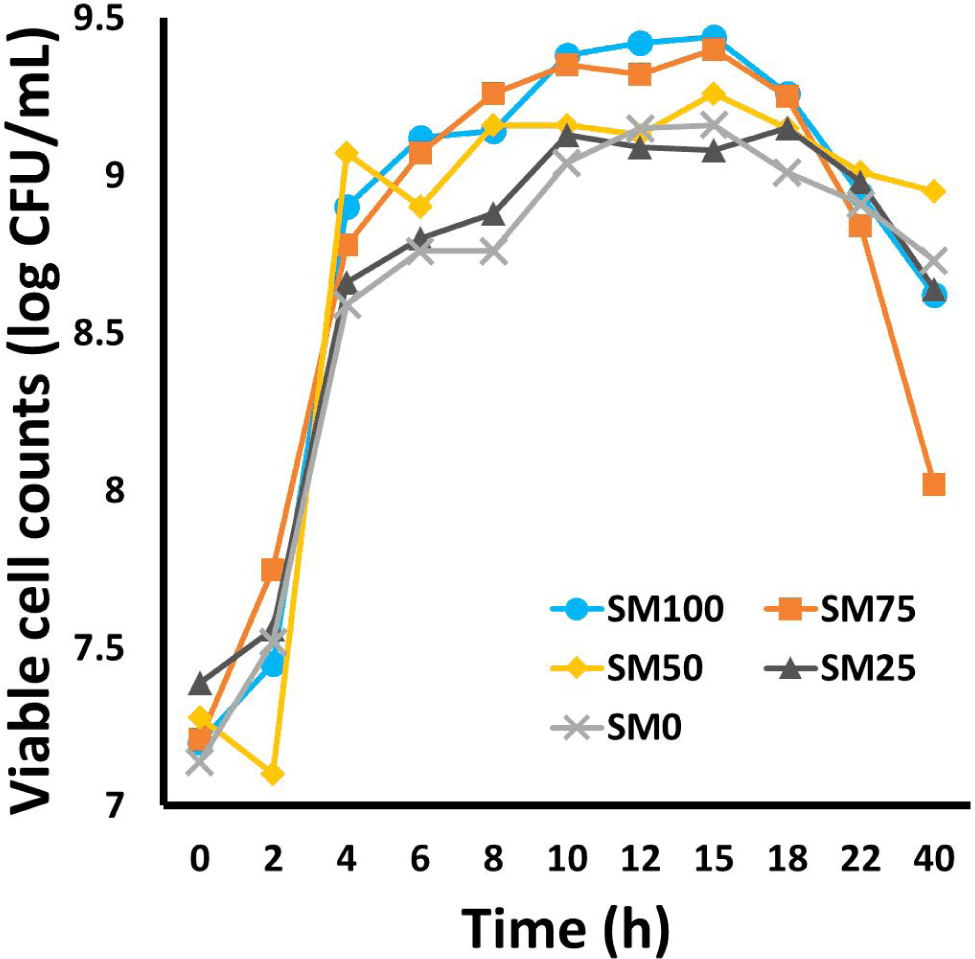
한편 비피도박테리아는 시간별 변화가 아닌 15시간 발효 종료 후 측정한 결과로서 기질에 따라 차이가 있었는데, SM25와 SM0에서 상대적으로 높은 균수가 유지되었으며, SM100에서는 비교적 낮은 수준을 나타냈다(Table 2). 이는 두유 비율 증가가 비피도박테리아 생육에 긍정적인 영향을 미쳤음을 시사한다.
| Treatment | Viable counts of Bifidobacterium1) (CFU/mL) |
|---|---|
| SM100 | 1.1 × 10⁵ |
| SM75 | 1.8 × 10⁵ |
| SM50 | 3.1 × 10⁵ |
| SM25 | 3.4 × 10⁵ |
| SM0 | 1.1 × 10⁶ |
각 처리구의 발효 종료 시점을 비교하기 위하여 목표 pH(약 4.5–4.6)에 도달하는 시간을 분석한 결과, SM50은 약 6시간으로 가장 짧았으며, SM100과 SM75는 약 7–8시간, SM25 및 SM0는 약 8시간 이상이 소요되었다. 이러한 차이는 혼합비가 발효 속도에 영향을 미쳤음을 보여준다.
고 찰
본 연구에서 탈지분유와 두유의 혼합비는 발효 속도와 미생물 생육 양상에 뚜렷한 영향을 미치는 것으로 나타났다. 특히 SM50 처리구에서 pH 4.6 도달 시간이 가장 짧게 나타난 것은 탈지분유가 제공하는 유당과 두유의 식물성 단백질이 상호 보완적으로 작용했기 때문으로 해석된다. 탈지분유는 유산균의 주요 탄소원인 유당을 공급하여 산 생성 속도를 촉진하는 반면, 두유는 단백질과 생리활성 성분을 통해 미생물 생육 환경에 영향을 미칠 수 있다.
탈지분유 비율이 높은 SM100과 SM75에서 비교적 빠른 산 생성이 관찰된 것은 유당 농도가 충분했기 때문으로 판단된다. 반면 SM25와 SM0에서는 발효 초기 산 생성 속도가 완만하게 나타났는데, 이는 두유에는 유당이 존재하지 않아 유산균의 기질 이용성이 제한되었기 때문으로 해석된다. 이러한 결과는 유당 존재 여부가 발효 초기 속도에 중요한 영향을 미친다는 기존 연구 결과와 일치한다[11,17,18].
한편, 두유 비율이 증가할수록 비피도박테리아의 생균수가 상대적으로 높게 유지된 점은 주목할 만하다. 이는 두유에 포함된 식물성 올리고당 및 기타 기능성 성분이 비피도박테리아의 생육에 긍정적으로 작용했을 가능성을 시사한다[12,19]. 따라서 혼합비 조절은 단순히 발효 속도뿐 아니라 미생물 군집 구성에도 영향을 줄 수 있는 중요한 인자로 판단된다.
종합적으로 볼 때, 탈지분유와 두유의 적절한 혼합은 발효 속도와 기능성을 동시에 고려할 수 있는 전략이 될 수 있으며, 특히 SM50 처리구에서 가장 빠른 발효가 나타난 것은 탈지분유가 제공하는 유당과 두유가 제공하는 식물성 단백질 및 올리고당이 균형적으로 존재하였기 때문으로 판단된다. 두유에 함유된 raffinose 및 stachyose와 같은 올리고당은 비피도박테리아를 포함한 일부 유산균의 생육을 촉진할 수 있으며, 우유 유래 유당은 젖산 생성에 필요한 주요 탄소원으로 작용한다. 따라서 SM50 처리구에서는 유당 공급과 미생물 성장인자의 제공이 동시에 이루어져 혼합 스타터의 활성이 극대화되었을 가능성이 있다. 반면 탈지분유 비율이 지나치게 높은 처리구에서는 두유 유래 성장인자의 기여가 제한되고, 두유 비율이 지나치게 높은 처리구에서는 유당 부족으로 인해 산 생성 속도가 감소한 것으로 해석된다.
요 약
탈지분유와 두유의 혼합비는 발효 특성 및 미생물 생육에 영향을 미치는 것으로 나타났다. 발효 과정에서 pH는 감소하고 적정산도와 생균수는 증가하였으며, 이러한 변화는 혼합비에 따라 차이를 보였다. 특히 SM50 처리구는 약 6시간에 pH 4.6에 도달하여 가장 빠른 발효 속도를 나타냈으며, SM100과 SM75는 약 7–8시간, SM25와 SM0는 8시간 이상이 소요되었다. 반면 두유 비율이 높은 처리구에서는 비피도박테리아의 생균수가 상대적으로 높게 나타났다.
이러한 결과는 탈지분유와 두유의 혼합비 조절을 통해 발효 속도와 미생물 생육 특성을 조절할 수 있음을 보여준다. 특히 탈지분유와 두유를 동일 비율로 혼합한 SM50 처리구는 가장 빠른 발효 특성을 나타내어 혼합 발효 요구르트 제조를 위한 적절한 배합비로 활용될 가능성을 확인하였다. 본 연구는 혼합 발효 요구르트의 제조 조건 설정을 위한 기초 자료를 제공하며, 탈지분유의 효율적 활용과 식물성 소재 기반 발효 제품 개발에 유용한 정보를 제시한다.


